癌细胞如何重塑线粒体以生长、扩散并抵抗治疗
了解肿瘤为何会改变能量利用方式,以及这种转变为何并不简单意味着线粒体已经受损。
要点
- •许多癌细胞即使在氧气充足时也高度依赖糖酵解来获取能量,这种模式被称为Warburg效应,最早由Otto Warburg于20世纪50年代描述。
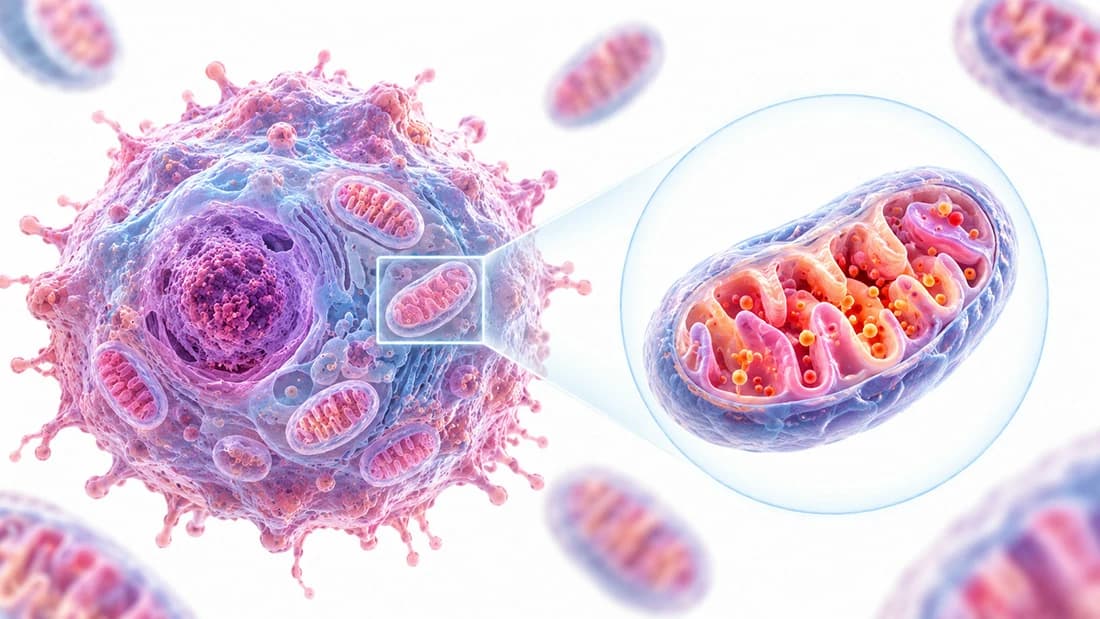
- •癌细胞中的线粒体通常是被重新利用,而不是发生故障;即使肿瘤将能量策略转向糖酵解,线粒体仍会继续支持细胞结构和信号传导。
- •线粒体控制着一种内置的细胞死亡过程,即细胞凋亡;癌细胞经常会进化出阻断这一过程的方法,从而继续分裂。
- •线粒体会不断分裂和融合,这一过程被称为线粒体动态变化,有助于癌细胞适应压力和不断变化的条件。
- •实验室研究显示,在线粒体和线粒体DNA有时可以在细胞之间转移;在实验模型中,这种转移能够恢复能量产生,并降低癌细胞对化疗的敏感性。
- •一些癌细胞,包括某些癌症干细胞群体,比起糖酵解更依赖线粒体呼吸,尤其是在治疗压力下。
- •线粒体活性和线粒体生物发生增加,与癌细胞在转移过程中存活并扩散到远处组织的能力有关。
- •线粒体活性氧既可能损伤细胞,也可能充当促进生长的信号,因此它们在癌症中的作用高度取决于浓度和细胞环境。
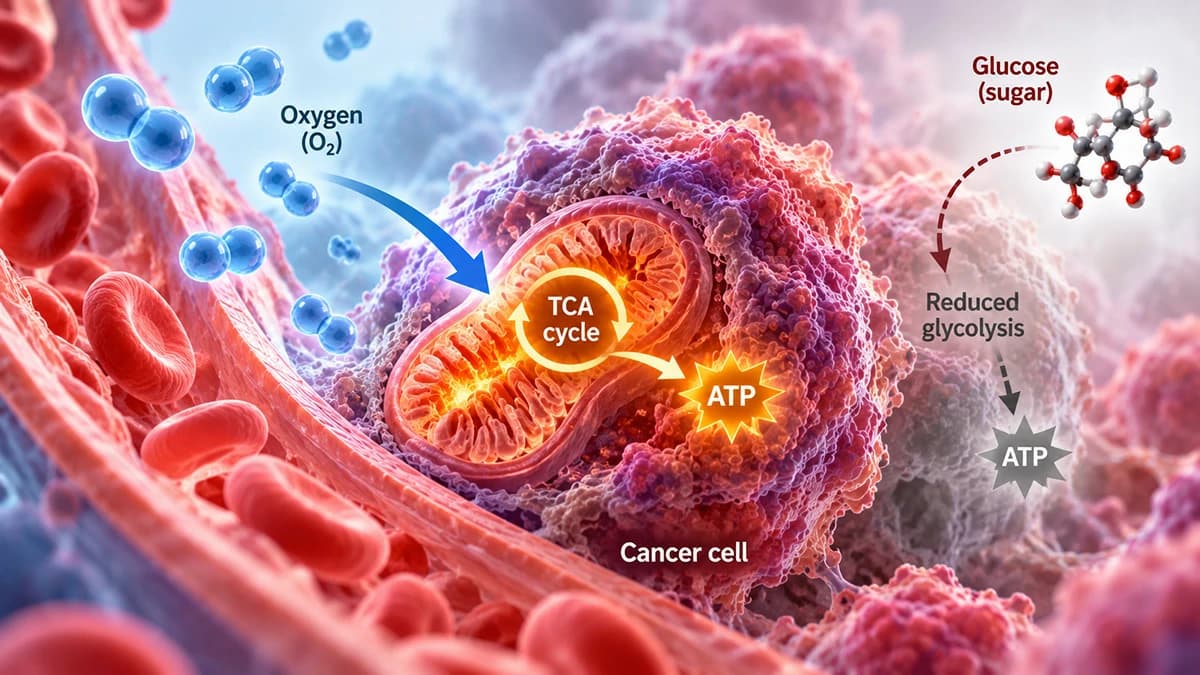
大多数细胞在被称为线粒体的小型结构中产生大部分能量。线粒体长期以来被昵称为细胞的“能量工厂”。通常,只有在氧气不足时,细胞才会通过发酵糖来快速获取能量,就像短跑运动员依靠短暂的无氧爆发,而不是持续的有氧配速。癌细胞的表现往往不同。即使周围氧气充足,许多肿瘤仍主要依赖这种速度更快但效率更低的途径,即糖酵解。这种模式最早由Otto Warburg于20世纪50年代描述,如今被称为Warburg效应。
数十年来,这一现象让人们认为这些细胞的线粒体内部出了问题。后来的研究大幅丰富了这一认识。研究人员发现,有氧糖酵解并不只是为了产生能量。它还为快速分裂的细胞提供合成新DNA、蛋白质和细胞膜所需的原材料。因此,正在生长的肿瘤细胞需要的不仅是燃料,也需要构建材料,而糖酵解恰好能比线粒体呼吸,即氧化磷酸化(OXPHOS),更快地同时提供这两者。
被重新利用,而非发生故障
在多数情况下,把癌细胞中的线粒体称为“坏了”,并不能准确描述实际发生的事情。许多肿瘤仍保留着能够进行氧化磷酸化的完整线粒体;它们只是改变了对这种能量途径的依赖程度。这种能量通路的重新平衡,如今被认为是癌症生物学的 defining features 之一,与不受控制的分裂和抵抗细胞死亡等更广为人知的特征并列。换句话说,代谢并不是癌症的副作用,而是肿瘤组织自身、维持持续生长的方式之一。
决定细胞生死的开关
线粒体的作用远不止产生能量。它们还控制着一种内置的自毁过程,即细胞凋亡;这一过程通常会在受损或不需要的细胞造成危害前将其清除。当细胞的线粒体将某些内部蛋白释放到周围的细胞质中时,这一释放会启动一连串反应,从细胞内部将其拆解。癌细胞经常会找到阻止这些蛋白释放的方法,使自毁开关保持关闭。
这也是为什么本应死亡的受损细胞反而会继续分裂的部分原因。它还有助于解释,为什么某些部分依赖诱导细胞凋亡发挥作用的癌症治疗,在肿瘤找到绕过这一特定检查点的方法后,会失去效果。
运动中的线粒体
线粒体并不是固定不动、静静存在于细胞内的结构。它们会不断分裂并重新融合,这一过程被称为线粒体动态变化。这种分裂与融合使细胞能够修复受损的线粒体片段,在细胞分裂过程中重新分配线粒体,并在压力下调整能量产量。在癌细胞中,这种灵活性似乎同时支持细胞增殖和生存,使肿瘤能够在条件变化时进一步适应,例如在不断增大的肿块深部氧气或营养物质变得稀缺时。
从邻近细胞借用能量
这一领域较为出人意料的发现之一是,线粒体并不总是局限于产生它们的细胞内。实验表明,完整的线粒体,甚至线粒体DNA(mtDNA)——即线粒体携带的一套独立且规模较小的遗传指令——都可以在细胞之间移动。在实验室研究中,原本失去自身mtDNA的癌细胞,在从周围细胞获得线粒体遗传物质后,恢复了进行呼吸作用和形成肿瘤的能力。
其他实验发现,癌细胞可以通过连接两者的微小管状桥梁,直接从附近的血管细胞中吸取线粒体;这一转移可测量地降低癌细胞对化疗的敏感性。这些发现令人关注,但主要来自细胞培养和动物模型。此类转移是否会在人类肿瘤中达到具有重要意义的规模,以及它在多大程度上促成了患者的治疗耐药性,目前仍在研究之中。
线粒体再次变得不可或缺时
并非所有癌细胞都以相同方式利用能量。一些细胞群,包括某些癌症干细胞——这是一类被认为会推动复发并抵抗治疗的肿瘤细胞亚群——比起糖酵解,更依赖氧化磷酸化。在胰腺癌模型中,当研究人员有意关闭一个关键的致癌基因后,仍然存活下来的肿瘤细胞被发现高度依赖线粒体功能才能维持生存。
针对胰腺癌干细胞的另一项研究发现,这些细胞可以来回切换代谢策略:在某些条件下更多依赖线粒体呼吸,在另一些条件下则更多依赖糖酵解。这种来回切换的灵活性有时被称为代谢可塑性,可能使这些细胞更难通过建立在单一假定燃料来源上的治疗被杀灭。
为扩散提供能量
当癌细胞离开原发肿瘤并前往身体其他部位时,线粒体似乎也会发挥作用,这一过程称为转移。研究表明,线粒体生物发生增加——即生成新的线粒体——以及氧化磷酸化活性增强,都与癌细胞在这一旅程中存活并在远处组织形成新生长灶的能力有关。至少对于部分癌细胞而言,功能正常的线粒体并不是需要被压低作用的负担;它们更像是一种被主动调动来支持扩散的资源。
一种作用具有两面性的分子
线粒体在产生能量时,会自然生成活性氧(ROS)作为副产物。大量ROS会损伤DNA、蛋白质和细胞膜,这也是这类氧化应激通常被认为有害的原因之一。但在较低且受到控制的水平下,同样的分子可以充当信号,推动细胞生长和生存,而不是造成损伤。
在癌症中,这种双重属性相当重要。适度的ROS水平可以支持肿瘤生长,而将ROS推高到超过细胞耐受范围,则可能反过来引发损伤或细胞死亡。正因如此,线粒体ROS既被描述为肿瘤可以利用的工具,也被视为潜在弱点;具体属于哪一种,取决于其剂量和周围的细胞环境。
更广泛的启示
总体来看,这些研究将线粒体视为癌症中的积极参与者,而不是被动旁观者或单纯发生故障的机器。线粒体帮助决定细胞生死,会在压力下调整自身的形态和数量,有时还会在细胞之间移动,并支持原发肿瘤的生长及其向其他部位扩散。
由于不同癌症类型之间,甚至同一肿瘤内部不同细胞之间的线粒体行为差异很大,因此不存在适用于所有情况的单一解释。有些肿瘤几乎完全依赖糖酵解;另一些肿瘤则显然需要功能正常的线粒体才能存活。这种差异正是线粒体受到关注、被视为潜在治疗靶点的原因之一,不过相关工作目前仍主要处于实验阶段。
旨在扰乱癌细胞代谢、包括线粒体功能的方法,正在实验室和动物模型中接受研究,目前尚未成为常规患者治疗。禁食或生酮饮食等饮食策略有时也会在这一背景下被讨论,但现有证据并不支持将其视为已被证实的癌症疗法。更明确的是,这种概念上的转变本身:理解肿瘤如何管理能量和线粒体,已经成为理解肿瘤如何生长、抵抗治疗并扩散的核心。
常见问题
参考文献
- Otto Warburg (1956). On the Origin of Cancer Cells
- Matthew G. Vander Heiden, Lewis C. Cantley, Craig B. Thompson (2009). Understanding the Warburg Effect: The Metabolic Requirements of Cell Proliferation
- Douglas R. Green, John C. Reed (1998). Mitochondria and Apoptosis
- Richard J. Youle, Alexander M. van der Bliek (2012). Mitochondrial Fission, Fusion, and Stress
- An S. Tan, James W. Baty, Lan-Feng Dong, Ayenachew Bezawork-Geleta, Berwini Endaya, Jacob Goodwin, Martina Bajzikova, Jaromira Kovarova, Martin Peterka, Bing Yan, Elham Alizadeh Pesdar, Margarita Sobol, Anatolyj Filimonenko, Shani Stuart, Magdalena Vondrusova, Katarina Kluckova, Karishma Sachaphibulkij, Jakub Rohlena, Pavel Hozak, Jaroslav Truksa, David Eccles, Larisa M. Haupt, Lyn R. Griffiths, Jiri Neuzil, Michael V. Berridge (2015). Mitochondrial Genome Acquisition Restores Respiratory Function and Tumorigenic Potential of Cancer Cells without Mitochondrial DNA
- (2013). Preferential transfer of mitochondria from endothelial to cancer cells through tunneling nanotubes modulates chemoresistance.
- (2014). Oncogene ablation-resistant pancreatic cancer cells depend on mitochondrial function.
- Patricia Sancho, Emma Burgos-Ramos, Alejandra Tavera, Tony Bou Kheir, Petra Jagust, Matthieu Schoenhals, David Barneda, Katherine Sellers, Ramon Campos-Olivas, Osvaldo Graña, Catarina R. Viera, Mariia Yuneva, Bruno Sainz, Christopher Heeschen (2015). MYC/PGC-1α Balance Determines the Metabolic Phenotype and Plasticity of Pancreatic Cancer Stem Cells
- Valerie S. LeBleu, Joyce T. O’Connell, Karina N. Gonzalez Herrera, Harriet Wikman, Klaus Pantel, Marcia C. Haigis, Fernanda Machado de Carvalho, Aline Damascena, Ludmilla Thome Domingos Chinen, Rafael M. Rocha, John M. Asara, Raghu Kalluri (2014). PGC-1α mediates mitochondrial biogenesis and oxidative phosphorylation in cancer cells to promote metastasis
- Simran S. Sabharwal, Paul T. Schumacker (2014). Mitochondrial ROS in cancer: initiators, amplifiers or an Achilles' heel?
- Douglas Hanahan, Robert A. Weinberg (2011). Hallmarks of Cancer: The Next Generation
- Ralph J. DeBerardinis, Navdeep S. Chandel (2016). Fundamentals of cancer metabolism
团队审阅: 本文由以下人员审阅 Canceria Research Team