الفِيروبتوز: كيف يمكن لشكل من موت الخلايا مدفوع بالحديد أن يكشف نقطة ضعف في السرطان
يرسم العلماء خريطة لطريقة مميزة لموت الخلايا، تدفعها الدهون المتضررة والحديد، للعثور على الخلايا السرطانية التي قد تكون شديدة القابلية للتأثر بها
أهم النقاط
- •الفِيروبتوز هو شكل من موت الخلايا المنظم يدفعه الحديد وتراكم الدهون المؤكسدة في أغشية الخلايا، وقد عُرّف وسُمّي رسميًا في عام 2012.
- •يختلف الفِيروبتوز كيميائيًا حيويًا وتحت المجهر عن الاستماتة والنخر، إذ لا يتضمن إنزيمات الكاسبيز أو تمزق الأغشية اللذين يُشاهدان في مسارات الموت الأخرى.
- •يحمي الإنزيم GPX4 الخلايا عادةً من الفِيروبتوز عبر إصلاح الدهون المؤكسدة في الأغشية، ويمكن أن يؤدي حجب GPX4 إلى تحفيز الموت الفِيروبتوزي في الخلايا السرطانية.
- •يوفر ناقل سطحي يتكون حول البروتين SLC7A11 السيستين اللازم لإنتاج الغلوتاثيون، ويساعد نشاطه الخلايا السرطانية على مقاومة الفِيروبتوز.
- •يزيد الإنزيم ACSL4 محتوى الخلية من الدهون القابلة للأكسدة بسهولة، ما يجعل الخلايا ذات النشاط المرتفع لـ ACSL4 أكثر حساسية للفِيروبتوز.
- •تُظهر الخلايا السرطانية الناجية المتحملة للدواء والخلايا الموجودة في حالة شبيهة باللحمة المتوسطة اعتمادًا متزايدًا على دفاعات بيروكسدة الدهون، ما قد يجعلها أكثر عرضة للنهج القائم على الفِيروبتوز.
- •يمكن لكابت الورم TP53 تعزيز الفِيروبتوز عبر مسار منفصل عن دوره التقليدي في تحفيز الاستماتة.
- •يمكن للخلايا التائية المناعية المنشطة تعزيز الفِيروبتوز في الخلايا الورمية خلال العلاج المناعي، ما يشير إلى صلة محتملة بين مسار الموت هذا والاستجابات المناعية المضادة للورم، مع بقاء ذلك مجالًا بحثيًا نشطًا.
على مدى عقود، ركز علم بيولوجيا السرطان على طريقتين مألوفتين لموت الخلية: الاستماتة (apoptosis)، التي تُسمى غالبًا الانتحار الخلوي المبرمج، والنخر (necrosis)، وهو تمزق أكثر فوضوية يحدث عادةً بسبب إصابة. وفي عام 2012، وصف الباحثون شيئًا مختلفًا. وأطلقوا عليه اسم الفِيروبتوز (ferroptosis)، المشتق من الكلمة اللاتينية التي تعني الحديد، لأن هذه العملية تعتمد على الحديد وتنتهي بنوع محدد من الضرر داخل الأغشية الدهنية للخلية. وقد فتح هذا الاكتشاف سؤالًا جديدًا أمام أبحاث السرطان: هل يمكن توجيه هذه العملية ضد الأورام؟
ما الذي يجعل الفِيروبتوز مختلفًا؟
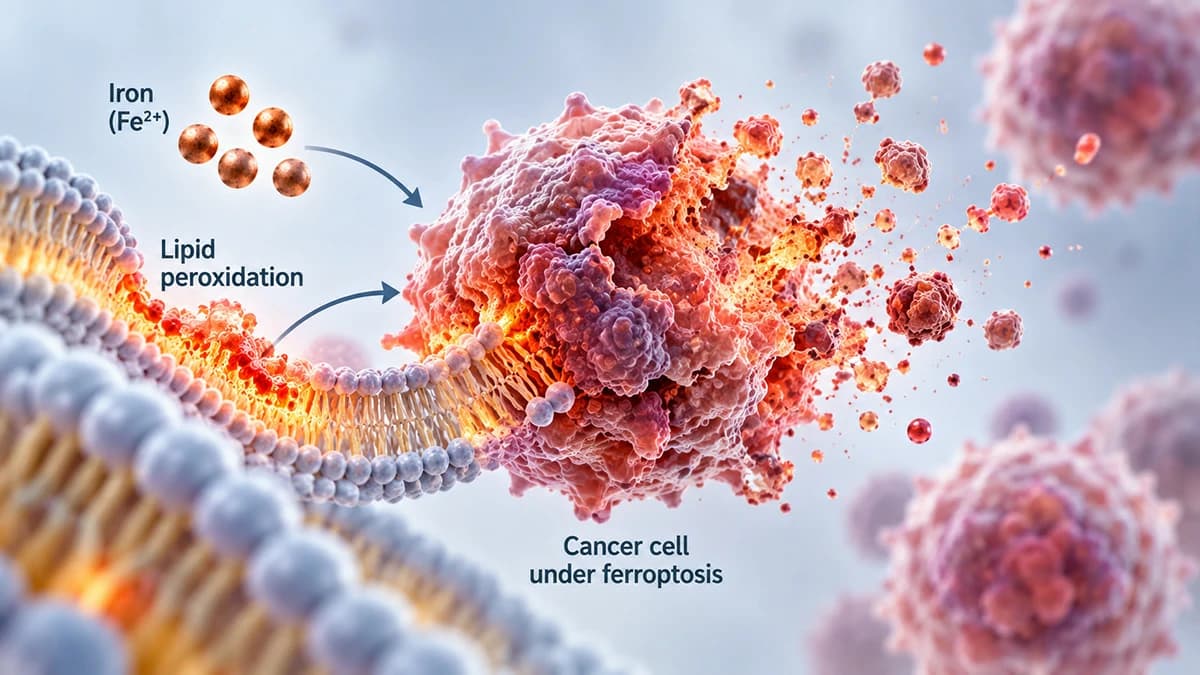
يحتوي كل غشاء خلوي على الدهون، وبعض هذه الدهون أكثر هشاشة من غيرها. وعندما تعجز الخلية عن إبقاء هذه الهشاشة تحت السيطرة، تبدأ تلك الدهون في التحلل من خلال تفاعل كيميائي يُسمى بيروكسدة الدهون، وهو أشبه بصدأ بطيء الحركة يصيب أغشية الخلية نفسها. وإذا تُرك هذا الضرر من دون ضبط، فإنه ينتشر ويدمر الخلية في نهاية المطاف. وهذا ما يعرّف الفِيروبتوز، وهو يبدو مختلفًا تمامًا عن مسارات الموت الأخرى تحت المجهر. فالاِستماتة تؤدي إلى انكماش الخلية المحتضرة وتغليفها بطريقة منظمة لتسهيل التخلص منها، باستخدام سلسلة من الإنزيمات القاطعة تُسمى الكاسبيزات (caspases). أما الفِيروبتوز فيؤدي بدلًا من ذلك إلى تورم الأغشية ثم تفككها في نهاية المطاف، من دون أي نشاط للكاسبيزات تعتمد عليه الاستماتة. ولهذا الفرق أهمية سريرية، لأن العديد من علاجات السرطان الحالية تعمل عبر دفع الخلايا نحو الاستماتة. وقد تظل الخلايا التي طورت طرقًا لمقاومة الاستماتة قابلة للقتل عبر هذا المسار المنفصل تمامًا.
الإنزيم الذي يبقي الفِيروبتوز تحت السيطرة
لا تكون الخلايا عديمة الدفاع أمام هذا النوع من الضرر. إذ يعمل إنزيم واقٍ يُسمى GPX4 باستمرار على إصلاح الدهون المؤكسدة قبل أن تتراكم، محولًا الأشكال السامة منها إلى أشكال غير ضارة. ويمكن تصور GPX4 على أنه فريق صيانة مستمر يسد التسربات الصغيرة قبل أن تتحول إلى فيضان. وعندما يُحجب GPX4 أو تنخفض مستوياته، تتراكم بيروكسيدات الدهون بسرعة، ويحدث الفِيروبتوز. وقد ثبت ذلك مباشرةً في الخلايا السرطانية، إذ أدى تعطيل GPX4 أو تثبيطه إلى تحفيز الموت الفِيروبتوزي، ما جعل هذا الإنزيم أحد أوضح المفاتيح التي اكتشفها الباحثون لتشغيل هذه العملية.
لا يستطيع GPX4 أداء وظيفته بمفرده. فهو يعتمد على جزيء صغير يُسمى الغلوتاثيون، وهو مضاد الأكسدة الأساسي في الخلية، لتنفيذ كيمياء الإصلاح الخاصة به. ويتطلب تصنيع الغلوتاثيون إمدادًا ثابتًا من حمض أميني يُسمى السيستين، وتستورد الخلايا السيستين عبر ناقل سطحي يُعرف باسم النظام xc-، ويتكون حول بروتين يُسمى SLC7A11. وتحافظ الخلايا السرطانية التي تزيد نشاط SLC7A11 على مخزون جيد من السيستين والغلوتاثيون، ما يبقي GPX4 فعالًا ويساعد الخلية على مقاومة الفِيروبتوز. وقد أصبح هذا الناقل محورًا لأبحاث السرطان تحديدًا لأن نشاطه يبدو مرتبطًا بمدى مقاومة الخلية الورمية لمسار الموت هذا.
لماذا يهم تركيب الدهون؟
ليست جميع دهون الأغشية معرضة للخطر بالقدر نفسه. فالأحماض الدهنية المتعددة غير المشبعة، وهي فئة من الدهون تحتوي على روابط كيميائية ضعيفة متعددة، تتأكسد بسهولة أكبر بكثير من الدهون المشبعة الأكثر استقرارًا. ويحدد إنزيم يُسمى ACSL4 كمية هذه الدهون الهشة التي تُدمج في أغشية الخلية من الأساس. وتنتهي الخلايا ذات النشاط المرتفع لـ ACSL4 بأغشية مليئة بالدهون المعرضة للأكسدة، ما يجعلها أكثر حساسية بدرجة ملحوظة للفِيروبتوز عندما تضعف دفاعاتها. وعلى العكس، تميل الخلايا ذات النشاط المنخفض لـ ACSL4 إلى أن تكون محمية نسبيًا، حتى تحت الضغط التأكسدي نفسه. ويساعد ذلك في تفسير سبب تفاوت الحساسية للفِيروبتوز بدرجة كبيرة بين خلية سرطانية وأخرى، بصرف النظر عن مستويات GPX4 وحدها.
لماذا تبدو بعض الخلايا السرطانية مكشوفة بصورة خاصة؟
يتعلق أحد أكثر النتائج إثارة للاهتمام في هذا المجال بالخلايا التي تنجو من العلاج بأدوية السرطان. إذ يمكن لنسبة صغيرة من الخلايا السرطانية أن تدخل في حالة مؤقتة بطيئة النمو بعد التعرض للدواء، تُعرف باسم حالة الخلايا الناجية المتحملة للدواء، وهي أشبه بالاختباء بدلًا من الموت. وقد وجد باحثون يعملون مع مجموعة Brent Stockwell أن هذه الخلايا الناجية، إلى جانب الخلايا السرطانية الموجودة في حالة أكثر شبهًا باللحمة المتوسطة وقابلية للهجرة، تصبح معتمدة على نحو غير معتاد على دفاعاتها ضد بيروكسدة الدهون للبقاء على قيد الحياة. ويبدو أن هذا الاعتماد يجعلها أكثر عرضة لتحفيز الفِيروبتوز مقارنةً بالخلايا الورمية الأصلية الحساسة للدواء. وإذا تأكد ذلك على نطاق أوسع، فقد يشير إلى استراتيجية تستهدف تحديدًا الخلايا التي تنجو عادةً من العلاج التقليدي وتتسبب لاحقًا في الانتكاس، مع أن هذا العمل يستند حاليًا إلى نماذج مختبرية وليس إلى نتائج لدى المرضى.
يرتبط الفِيروبتوز أيضًا بأحد أكثر الجينات دراسةً في علم بيولوجيا السرطان. فقد ثبت أن TP53، وهو جين كابت للورم يحد عادةً من نمو الخلايا ويمكنه تحفيز الاستماتة، يعزز الفِيروبتوز أيضًا عبر مسار منفصل لا يعتمد على إشاراته الاستماتية التقليدية. ويشير ذلك إلى أن TP53 قد يحمي من السرطان عبر أكثر من مسار واحد لموت الخلايا، ما يوسع فهم الطريقة التي يؤدي بها هذا الجين المعروف وظيفته.
رابط محتمل بجهاز المناعة
يربط مسار بحثي آخر الفِيروبتوز بجهاز المناعة نفسه. فخلال العلاج المناعي للسرطان، تطلق الخلايا التائية CD8+ المنشطة، وهي الخلايا التي تقتل الأورام في جهاز المناعة، جزيئات إشارية يمكنها دفع الخلايا الورمية نحو الفِيروبتوز. وهذا يثير احتمال أن يكون جزء من تأثير العلاج المناعي في الأورام ناتجًا عن مسار الموت المعتمد على الحديد هذا، إلى جانب آليات القتل الأكثر شيوعًا التي يستخدمها جهاز المناعة. ولا تزال هذه العلاقة قيد التوضيح، وينبغي النظر إليها باعتبارها اتجاهًا بحثيًا نشطًا، لا جزءًا راسخًا من الفهم الحالي لطريقة عمل العلاجات المناعية.
أين وصلت الأبحاث؟
تصف هذه النتائج مجتمعةً الفِيروبتوز بأنه عملية منظمة بدقة تقع عند تقاطع التعامل مع الحديد، وكيمياء الدهون، ودفاعات الخلية المضادة للأكسدة؛ وهي صلة رسمتها المراجعات الأوسع لهذا المجال عبر الأيض وبيولوجيا الأكسدة والاختزال عمومًا. ويُعد هذا الاتساع جزءًا من سبب اجتذاب الموضوع اهتمامًا علميًا مستمرًا: إذ تظهر الآليات نفسها في سياقات تتراوح بين مقاومة الأدوية وكبح الأورام والإشارات المناعية.
ومن المهم توضيح ما يعنيه هذا وما لا يعنيه للمرضى اليوم. فلا يوجد حاليًا دواء محفز للفِيروبتوز معتمد لعلاج السرطان. وتأتي النتائج المتعلقة بالخلايا الناجية، والحالات الشبيهة باللحمة المتوسطة، والفِيروبتوز المدفوع بالمناعة، بصورة أساسية من زراعة الخلايا والدراسات الحيوانية، وليس من نتائج سريرية مؤكدة لدى البشر. ولا يدعم أي من هذه الأبحاث استخدام الحمية الغذائية أو تقييد الحديد أو المكملات وسيلةً لتحفيز الفِيروبتوز ضد السرطان، كما لا توجد أدلة حالية تؤيد هذا النهج. وما تقدمه الأبحاث هو منظور جديد فعلًا لمشكلة قديمة: مسار موت منفصل عن المسارات التي تعتمد عليها معظم الأدوية الحالية، وخريطة آخذة في الاتساع لما يجعل بعض الخلايا السرطانية أكثر تعرضًا له من غيرها.
الأسئلة الشائعة
المراجع
- Scott J. Dixon, Kathryn M. Lemberg, Michael R. Lamprecht, Rachid Skouta, Eleina M. Zaitsev, Caroline E. Gleason, Darpan N. Patel, Andras J. Bauer, Alexandra M. Cantley, Wan Seok Yang, Barclay Morrison, Brent R. Stockwell (2012). Ferroptosis: An Iron-Dependent Form of Nonapoptotic Cell Death
- Wan Seok Yang, Brent R. Stockwell (2016). Ferroptosis: Death by Lipid Peroxidation
- Wan Seok Yang, Rohitha SriRamaratnam, Matthew E. Welsch, Kenichi Shimada, Rachid Skouta, Vasanthi S. Viswanathan, Jaime H. Cheah, Paul A. Clemons, Alykhan F. Shamji, Clary B. Clish, Lewis M. Brown, Albert W. Girotti, Virginia W. Cornish, Stuart L. Schreiber, Brent R. Stockwell (2014). Regulation of Ferroptotic Cancer Cell Death by GPX4
- (2021). Cystine transporter SLC7A11/xCT in cancer: ferroptosis, nutrient dependency, and cancer therapy.
- Vasanthi S. Viswanathan, Matthew J. Ryan, Harshil D. Dhruv, Shubhroz Gill, Ossia M. Eichhoff, Brinton Seashore-Ludlow, Samuel D. Kaffenberger, John K. Eaton, Kenichi Shimada, Andrew J. Aguirre, Srinivas R. Viswanathan, Shrikanta Chattopadhyay, Pablo Tamayo, Wan Seok Yang, Matthew G. Rees, Sixun Chen, Zarko V. Boskovic, Sarah Javaid, Cherrie Huang, Xiaoyun Wu, Yuen-Yi Tseng, Elisabeth M. Roider, Dong Gao, James M. Cleary, Brian M. Wolpin, Jill P. Mesirov, Daniel A. Haber, Jeffrey A. Engelman, Jesse S. Boehm, Joanne D. Kotz, Cindy S. Hon, Yu Chen, William C. Hahn, Mitchell P. Levesque, John G. Doench, Michael E. Berens, Alykhan F. Shamji, Paul A. Clemons, Brent R. Stockwell, Stuart L. Schreiber (2017). Dependency of a therapy-resistant state of cancer cells on a lipid peroxidase pathway
- Matthew J. Hangauer, Vasanthi S. Viswanathan, Matthew J. Ryan, Dhruv Bole, John K. Eaton, Alexandre Matov, Jacqueline Galeas, Harshil D. Dhruv, Michael E. Berens, Stuart L. Schreiber, Frank McCormick, Michael T. McManus (2017). Drug-tolerant persister cancer cells are vulnerable to GPX4 inhibition
- Le Jiang, Ning Kon, Tongyuan Li, Shang-Jui Wang, Tao Su, Hanina Hibshoosh, Richard Baer, Wei Gu (2015). Ferroptosis as a p53-mediated activity during tumour suppression
- Weimin Wang, Michael Green, Jae Eun Choi, Miguel Gijón, Paul D. Kennedy, Jeffrey K. Johnson, Peng Liao, Xueting Lang, Ilona Kryczek, Amanda Sell, Houjun Xia, Jiajia Zhou, Gaopeng Li, Jing Li, Wei Li, Shuang Wei, Linda Vatan, Hongjuan Zhang, Wojciech Szeliga, Wei Gu, Rebecca Liu, Theodore S. Lawrence, Candice Lamb, Yuri Tanno, Marcin Cieslik, Everett Stone, George Georgiou, Timothy A. Chan, Arul Chinnaiyan, Weiping Zou (2019). CD8+ T cells regulate tumour ferroptosis during cancer immunotherapy
- (2017). ACSL4 dictates ferroptosis sensitivity by shaping cellular lipid composition.
- Brent R. Stockwell, José Pedro Friedmann Angeli, Hülya Bayir, Ashley I. Bush, Marcus Conrad, Scott J. Dixon, Simone Fulda, Sergio Gascón, Stavroula K. Hatzios, Valerian E. Kagan, Kay Noel, Xuejun Jiang, Andreas Linkermann, Maureen E. Murphy, Michael Overholtzer, Atsushi Oyagi, Gabriela C. Pagnussat, Jason Park, Qitao Ran, Craig S. Rosenfeld, Konstantin Salnikow, Daolin Tang, Frank M. Torti, Suzy V. Torti, Shinya Toyokuni, K.A. Woerpel, Donna D. Zhang (2017). Ferroptosis: A Regulated Cell Death Nexus Linking Metabolism, Redox Biology, and Disease
مراجعة الفريق: تمت مراجعة هذا المقال بواسطة Canceria Research Team