كيف تعيد الخلايا السرطانية برمجة ميتوكوندرياتها لتنمو وتنتشر وتقاوم العلاج
نظرة على أسباب تغيير الأورام لطريقة استخدامها للطاقة، ولماذا لا يُعد هذا التحول ببساطة علامة على تلف الميتوكوندريا.
أهم النقاط
- •تعتمد كثير من الخلايا السرطانية بدرجة كبيرة على التحلل السكري للحصول على الطاقة حتى عند توافر الأكسجين، وهو نمط يُعرف بتأثير فاربورغ، وقد وصفه أوتو فاربورغ لأول مرة في خمسينيات القرن العشرين.
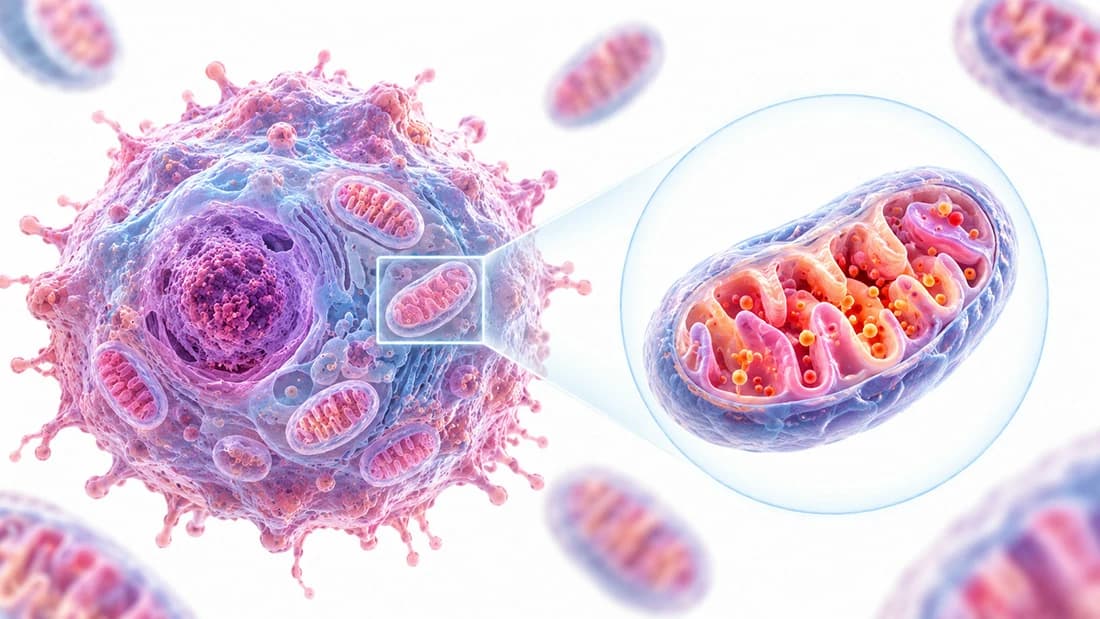
- •تُعاد الاستفادة من الميتوكوندريا في الخلايا السرطانية عمومًا بدلًا من أن تكون تالفة، إذ تواصل دعم بنية الخلية والإشارات الخلوية حتى مع تحول الورم في استراتيجيته لإنتاج الطاقة نحو التحلل السكري.
- •تتحكم الميتوكوندريا في عملية مبرمجة لموت الخلية تُسمى الاستماتة، وكثيرًا ما تطور الخلايا السرطانية طرقًا لمنع هذه العملية كي تستمر في الانقسام.
- •تنقسم الميتوكوندريا وتلتحم باستمرار، في عملية تُسمى ديناميكيات الميتوكوندريا، وتساعد الخلايا السرطانية على التكيف مع الضغط والظروف المتغيرة.
- •تُظهر الدراسات المختبرية أن الميتوكوندريا وDNA الميتوكوندريا يمكن أن ينتقلا أحيانًا بين الخلايا، ما قد يستعيد إنتاج الطاقة ويقلل الحساسية للعلاج الكيميائي في النماذج التجريبية.
- •تعتمد بعض الخلايا السرطانية، ومنها مجموعات معينة من الخلايا الجذعية السرطانية، على التنفس الميتوكوندري أكثر من اعتمادها على التحلل السكري، ولا سيما تحت ضغط العلاج.
- •ارتبط ارتفاع نشاط الميتوكوندريا وتكوّنها بقدرة الخلايا السرطانية على البقاء والانتشار إلى الأنسجة البعيدة أثناء النقيلة.
- •يمكن لأنواع الأكسجين التفاعلية الميتوكوندرية أن تلحق الضرر بالخلايا وأن تعمل في الوقت نفسه بوصفها إشارات محفزة للنمو، ما يجعل دورها في السرطان معتمدًا بدرجة كبيرة على التركيز والسياق.
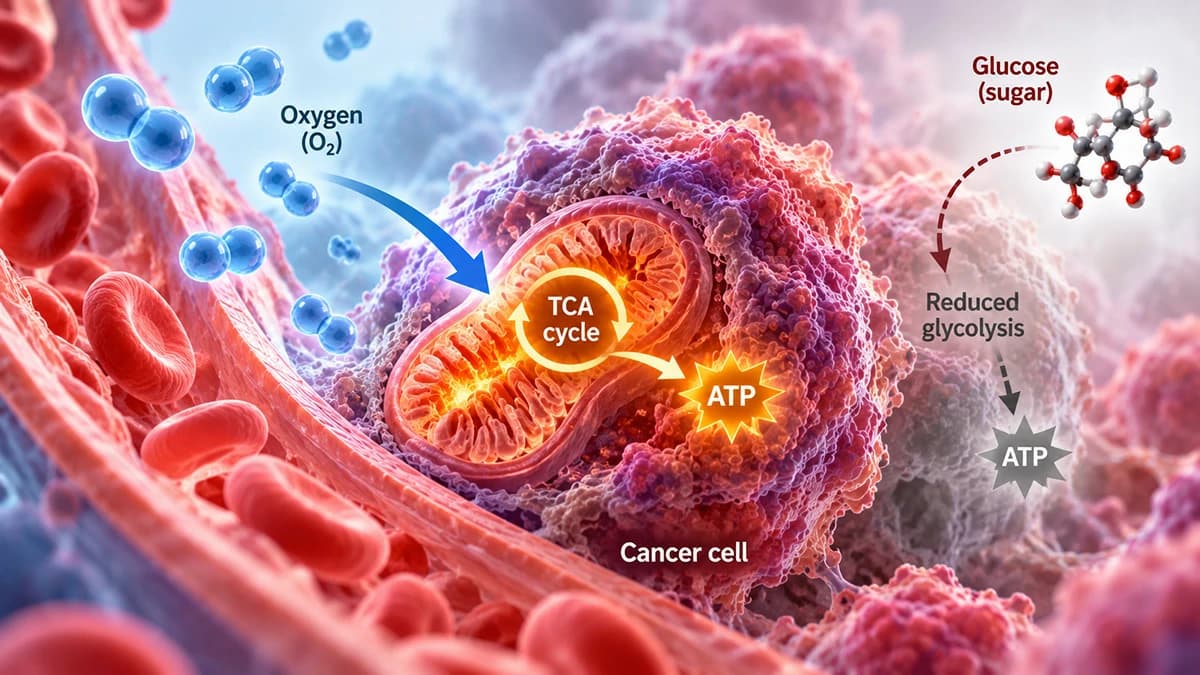
تنتج معظم الخلايا الجزء الأكبر من طاقتها داخل الميتوكوندريا، وهي تراكيب صغيرة لطالما لُقبت بمحطات توليد الطاقة في الخلية. في الظروف الطبيعية، لا تلجأ الخلية إلى تخمير السكر للحصول على طاقة سريعة إلا عندما يكون الأكسجين شحيحًا، تمامًا كما يعتمد العداء على دفعة سريعة من الجهد اللاهوائي بدلًا من الوتيرة الهوائية الثابتة. لكن الخلايا السرطانية غالبًا ما تتصرف بطريقة مختلفة. فحتى مع توافر الأكسجين بكثرة، تستمر أورام كثيرة في الاعتماد أساسًا على هذا المسار الأسرع لكنه الأقل كفاءة، والمعروف باسم التحلل السكري. وقد وصف أوتو فاربورغ هذا النمط لأول مرة في خمسينيات القرن العشرين، ويُعرف الآن بتأثير فاربورغ.
لعقود، أوحت هذه الملاحظة بأن شيئًا ما قد حدث بشكل خاطئ داخل ميتوكوندريا هذه الخلايا. لكن الأبحاث اللاحقة جعلت الصورة أكثر تعقيدًا بكثير. فقد أظهر الباحثون أن التحلل السكري الهوائي لا يتعلق بالطاقة وحدها. فهو يوفّر أيضًا المواد الخام التي تحتاج إليها الخلية سريعة الانقسام لبناء DNA والبروتينات والأغشية الجديدة؛ ولذلك تحتاج الخلية الورمية النامية إلى اللبنات الأساسية بقدر حاجتها إلى الوقود، ويصادف أن التحلل السكري يوفّر كليهما بوتيرة أسرع مما يستطيع التنفس الميتوكوندري، أو الفسفرة التأكسدية (OXPHOS)، توفيرهما.
إعادة توظيف لا تلف
إن وصف الميتوكوندريا بأنها «تالفة» في الخلايا السرطانية لا يعكس ما يحدث فعليًا في معظم الحالات. فكثير من الأورام تحتفظ بميتوكوندريا قادرة تمامًا على إجراء الفسفرة التأكسدية؛ لكنها تغيّر ببساطة مقدار اعتمادها عليها. ويُعد هذا الاختلال المتوازن في مسارات الطاقة الآن إحدى السمات المميزة لبيولوجيا السرطان، إلى جانب السمات المعروفة أكثر، مثل الانقسام غير المنضبط ومقاومة موت الخلايا. وبعبارة أخرى، لا يُعد الأيض أثرًا جانبيًا للسرطان، بل إحدى الطرق التي ينظم بها الورم نفسه ليستمر في النمو.
التحول الذي يحدد بقاء الخلية أو موتها
تؤدي الميتوكوندريا أدوارًا تتجاوز إنتاج الطاقة بكثير. فهي تتحكم أيضًا في عملية تدمير ذاتي مبرمجة تُسمى الاستماتة، والتي تخلّص الجسم عادةً من الخلايا المتضررة أو غير المرغوب فيها قبل أن تتمكن من إحداث ضرر. عندما تطلق ميتوكوندريا الخلية بروتينات داخلية معينة إلى السيتوبلازم المحيط، يطلق هذا التحرر سلسلة من التفاعلات التي تفكك الخلية من الداخل. وكثيرًا ما تجد الخلايا السرطانية طرقًا لمنع هذا التحرر، مبقيةً مفتاح التدمير الذاتي في وضع الإيقاف.
وهذا جزء من سبب استمرار الخلايا المتضررة، التي كان ينبغي أن تموت، في الانقسام بدلًا من ذلك. كما يساعد في تفسير سبب فقدان بعض علاجات السرطان، التي تعمل جزئيًا من خلال تحفيز الاستماتة، فعاليتها عندما يجد الورم طريقة لتجاوز نقطة التحقق هذه.
الميتوكوندريا في حالة حركة
الميتوكوندريا ليست أجسامًا ثابتة وساكنة داخل الخلية. فهي تنقسم باستمرار ثم تلتحم من جديد، في عملية تُعرف باسم ديناميكيات الميتوكوندريا. ويتيح هذا الانشطار والاندماج للخلية إصلاح الأجزاء الميتوكوندرية المتضررة، وإعادة توزيعها أثناء الانقسام، وضبط كمية الطاقة التي تنتجها في ظروف الضغط. ويبدو أن هذه المرونة في الخلايا السرطانية تدعم التكاثر والبقاء معًا، ما يمنح الأورام طريقة أخرى للتكيف مع تغير الظروف، مثل شح الأكسجين أو المغذيات في عمق كتلة نامية.
استعارة الطاقة من الخلايا المجاورة
من النتائج الأكثر إثارة للدهشة في هذا المجال أن الميتوكوندريا لا تظل دائمًا محصورة في الخلية التي أنتجتها. فقد أظهرت التجارب أن الميتوكوندريا الكاملة، وحتى DNA الميتوكوندريا (mtDNA)، وهو مجموعة صغيرة منفصلة من التعليمات الجينية التي تحملها الميتوكوندريا، يمكن أن تنتقل بين الخلايا. وفي الدراسات المختبرية، استعادت الخلايا السرطانية التي فقدت mtDNA الخاص بها قدرتها على التنفس وتكوين الأورام بعد حصولها على مادة وراثية ميتوكوندرية من الخلايا المحيطة.
ووجدت تجارب أخرى أن الخلايا السرطانية يمكن أن تسحب الميتوكوندريا مباشرة من خلايا الأوعية الدموية القريبة عبر جسور صغيرة شبيهة بالأنابيب تصل بين الخليتين؛ وقد أدى هذا النقل إلى خفض حساسية الخلايا السرطانية للعلاج الكيميائي بدرجة قابلة للقياس. وتُعد هذه النتائج لافتة، لكنها تأتي أساسًا من مزارع الخلايا والنماذج الحيوانية. ولا يزال الباحثون يدرسون ما إذا كان هذا النوع من النقل يحدث على نطاق مؤثر في الأورام البشرية، ومدى مساهمته في مقاومة العلاج لدى المرضى.
عندما تصبح الميتوكوندريا ضرورية من جديد
لا تعتمد جميع الخلايا السرطانية بالطريقة نفسها. فبعض المجموعات، ومنها خلايا جذعية سرطانية معينة، وهي مجموعة فرعية من الخلايا الورمية يُعتقد أنها تقود الانتكاس وتقاوم العلاج، تعتمد بدرجة أكبر على الفسفرة التأكسدية بدلًا من التحلل السكري. وفي نماذج سرطان البنكرياس، تبيّن أن الخلايا الورمية التي نجت بعد إيقاف جين رئيسي محفز للسرطان عمدًا تعتمد بدرجة كبيرة على وظيفة الميتوكوندريا لمجرد البقاء حية.
ووجدت أبحاث منفصلة على الخلايا الجذعية لسرطان البنكرياس أن هذه الخلايا تستطيع التحول ذهابًا وإيابًا بين استراتيجيتين أيضيتين، فتعتمد أكثر على التنفس الميتوكوندري في بعض الظروف، وعلى التحلل السكري في ظروف أخرى. وقد تجعل هذه المرونة المتبادلة، التي تُسمى أحيانًا اللدونة الأيضية، قتل هذه الخلايا بعينها أكثر صعوبة باستخدام علاجات مبنية على افتراض وجود مصدر وقود واحد.
تمويل الانتشار بالطاقة
يبدو أن للميتوكوندريا دورًا أيضًا عندما تغادر الخلايا السرطانية الورم الأصلي وتنتقل إلى أماكن أخرى في الجسم، وهي عملية تُسمى النقيلة. وقد ربطت الأبحاث بين زيادة تكوّن الميتوكوندريا، أي بناء ميتوكوندريا جديدة، إلى جانب ارتفاع نشاط الفسفرة التأكسدية، وبين قدرة الخلايا السرطانية على البقاء خلال هذه الرحلة وتكوين نموات جديدة في أنسجة بعيدة. وبالنسبة إلى بعض الخلايا السرطانية على الأقل، لا تمثل الميتوكوندريا الوظيفية عبئًا ينبغي التقليل من شأنه، بل تبدو أشبه بأصل تُجنّده الخلية بنشاط لدعم الانتشار.
جزيء ذو تأثيرين متعاكسين
تنتج الميتوكوندريا بصورة طبيعية أنواع الأكسجين التفاعلية (ROS) بوصفها ناتجًا ثانويًا عن توليد الطاقة. وعندما توجد ROS بكميات كبيرة، فإنها تلحق الضرر بالـDNA والبروتينات وأغشية الخلايا، ولذلك يُعد هذا النوع من الإجهاد التأكسدي ضارًا عمومًا. لكن عند مستويات أقل ومنضبطة، تعمل الجزيئات نفسها بوصفها إشارات تدفع الخلايا نحو النمو والبقاء بدلًا من إلحاق الضرر بها.
وفي السرطان، تكتسب هذه الطبيعة المزدوجة أهمية كبيرة. فقد تدعم المستويات المعتدلة من ROS نمو الورم، في حين أن دفع ROS إلى ما يتجاوز قدرة الخلية على التحمل قد يحفز الضرر أو الموت بدلًا من ذلك. ولهذا التوتر، وُصفت ROS الميتوكوندرية بأنها أداة تستغلها الأورام ونقطة ضعف محتملة في الوقت نفسه، تبعًا للجرعة والسياق الخلوي المحيط.
ما الذي تشير إليه الصورة الأكبر؟
مجتمعةً، تتعامل هذه الأبحاث مع الميتوكوندريا بوصفها مشاركًا نشطًا في السرطان، لا متفرجًا سلبيًا أو مجرد آلية معطلة. فهي تساعد في تحديد ما إذا كانت الخلية ستعيش أو تموت، وتعدّل شكلها وعددها تحت الضغط، وقد تنتقل أحيانًا بين الخلايا، كما تدعم نمو الورم الأولي وانتشاره إلى أماكن أخرى.
ولأن سلوك الميتوكوندريا يختلف بدرجة كبيرة بين أنواع السرطان، وحتى بين الخلايا داخل الورم نفسه، فلا توجد قصة واحدة تنطبق على كل الحالات. فبعض الأورام يعتمد تقريبًا بالكامل على التحلل السكري، في حين تحتاج أورام أخرى بوضوح إلى ميتوكوندريا عاملة للبقاء. وهذا التباين تحديدًا هو سبب الاهتمام بالميتوكوندريا بوصفها هدفًا علاجيًا محتملًا، رغم أن هذا العمل لا يزال تجريبيًا إلى حد كبير.
تُدرس في المختبرات والنماذج الحيوانية أساليب تهدف إلى تعطيل أيض الخلايا السرطانية، بما في ذلك وظيفة الميتوكوندريا، لكنها لم تثبت بعد كعلاجات روتينية للمرضى. وتُناقش أحيانًا الاستراتيجيات الغذائية، مثل الصيام أو اتباع نظام غذائي كيتوني، في هذا السياق، لكن الأدلة الحالية لا تدعم التعامل معها بوصفها علاجات مثبتة للسرطان. وما أصبح أوضح هو التحول المفاهيمي نفسه: إذ بات فهم كيفية إدارة الورم لطاقته وميتوكوندرياته أمرًا محوريًا لفهم كيفية نموه ومقاومته للعلاج وانتشاره.
الأسئلة الشائعة
المراجع
- Otto Warburg (1956). On the Origin of Cancer Cells
- Matthew G. Vander Heiden, Lewis C. Cantley, Craig B. Thompson (2009). Understanding the Warburg Effect: The Metabolic Requirements of Cell Proliferation
- Douglas R. Green, John C. Reed (1998). Mitochondria and Apoptosis
- Richard J. Youle, Alexander M. van der Bliek (2012). Mitochondrial Fission, Fusion, and Stress
- An S. Tan, James W. Baty, Lan-Feng Dong, Ayenachew Bezawork-Geleta, Berwini Endaya, Jacob Goodwin, Martina Bajzikova, Jaromira Kovarova, Martin Peterka, Bing Yan, Elham Alizadeh Pesdar, Margarita Sobol, Anatolyj Filimonenko, Shani Stuart, Magdalena Vondrusova, Katarina Kluckova, Karishma Sachaphibulkij, Jakub Rohlena, Pavel Hozak, Jaroslav Truksa, David Eccles, Larisa M. Haupt, Lyn R. Griffiths, Jiri Neuzil, Michael V. Berridge (2015). Mitochondrial Genome Acquisition Restores Respiratory Function and Tumorigenic Potential of Cancer Cells without Mitochondrial DNA
- (2013). Preferential transfer of mitochondria from endothelial to cancer cells through tunneling nanotubes modulates chemoresistance.
- (2014). Oncogene ablation-resistant pancreatic cancer cells depend on mitochondrial function.
- Patricia Sancho, Emma Burgos-Ramos, Alejandra Tavera, Tony Bou Kheir, Petra Jagust, Matthieu Schoenhals, David Barneda, Katherine Sellers, Ramon Campos-Olivas, Osvaldo Graña, Catarina R. Viera, Mariia Yuneva, Bruno Sainz, Christopher Heeschen (2015). MYC/PGC-1α Balance Determines the Metabolic Phenotype and Plasticity of Pancreatic Cancer Stem Cells
- Valerie S. LeBleu, Joyce T. O’Connell, Karina N. Gonzalez Herrera, Harriet Wikman, Klaus Pantel, Marcia C. Haigis, Fernanda Machado de Carvalho, Aline Damascena, Ludmilla Thome Domingos Chinen, Rafael M. Rocha, John M. Asara, Raghu Kalluri (2014). PGC-1α mediates mitochondrial biogenesis and oxidative phosphorylation in cancer cells to promote metastasis
- Simran S. Sabharwal, Paul T. Schumacker (2014). Mitochondrial ROS in cancer: initiators, amplifiers or an Achilles' heel?
- Douglas Hanahan, Robert A. Weinberg (2011). Hallmarks of Cancer: The Next Generation
- Ralph J. DeBerardinis, Navdeep S. Chandel (2016). Fundamentals of cancer metabolism
مراجعة الفريق: تمت مراجعة هذا المقال بواسطة Canceria Research Team