为什么一些癌细胞依赖氧气而不是糖供能
新研究使经典的 Warburg 效应变得更加复杂:研究显示,具有干细胞样特征、耐药性和转移能力的癌细胞,往往依赖氧化磷酸化,而不只是糖酵解。
要点
- •Otto Warburg 最初观察到,即使存在氧气,癌细胞仍偏好糖酵解;这一现象后来被称为 Warburg 效应,并影响了数十年的癌症代谢研究。
- •使用糖酵解并不意味着癌细胞的线粒体已经损坏;许多肿瘤细胞仍保有完整的氧化磷酸化能力。
- •实验室研究显示,白血病干细胞和胶质瘤干细胞比糖酵解更依赖氧化磷酸化。
- •能够在靶向致癌基因的治疗中存活下来的胰腺癌细胞,可以转而依赖线粒体,这一转变部分由 KRAS 和 MYC 信号驱动。
- •与原发肿瘤细胞相比,与转移相关的循环肿瘤细胞表现出更高的线粒体活性和氧化磷酸化水平。
- •肿瘤可以包含代谢方式不同的细胞群:糖酵解细胞输出乳酸,附近代谢氧化能力更强的细胞则将乳酸作为燃料使用。
- •干扰线粒体能量产生的药物(如二甲双胍)是癌症临床前研究的活跃领域,但目前还不是获批的治疗方法。
- •现代研究将癌症代谢描述为具有灵活性:细胞会根据遗传特征和环境,在糖酵解与氧化磷酸化之间转换。
在20世纪的大部分时间里,有一个观察结果主导了科学界对癌症能量利用方式的理解。20世纪20年代,生物化学家 Otto Warburg 注意到,在实验室培养的肿瘤细胞中存在一种奇特现象。大多数细胞在有氧气时,会利用氧气在细胞线粒体内高效“燃烧”燃料;线粒体是类似细胞发电厂的细胞器。然而,肿瘤细胞却持续采用一种速度更快但效率更低的捷径——糖酵解,即使周围有充足氧气,仍然分解糖来获取能量。Warburg 描述了这种模式,即如今所称的有氧糖酵解或 Warburg 效应,并认为这反映出癌细胞产生能量的方式存在根本差异。
这一观察结果影响了数十年的癌症研究。它解释了医生早已注意到的一些异常现象,例如肿瘤会吸收异常大量的葡萄糖;如今,医学影像检查仍利用这一特性来定位癌症。但如果问所有癌细胞是否都以这种方式运作,那么近几十年的研究给出的答案,比最初的图景更加复杂。
功能正常的线粒体,而非损坏的机器
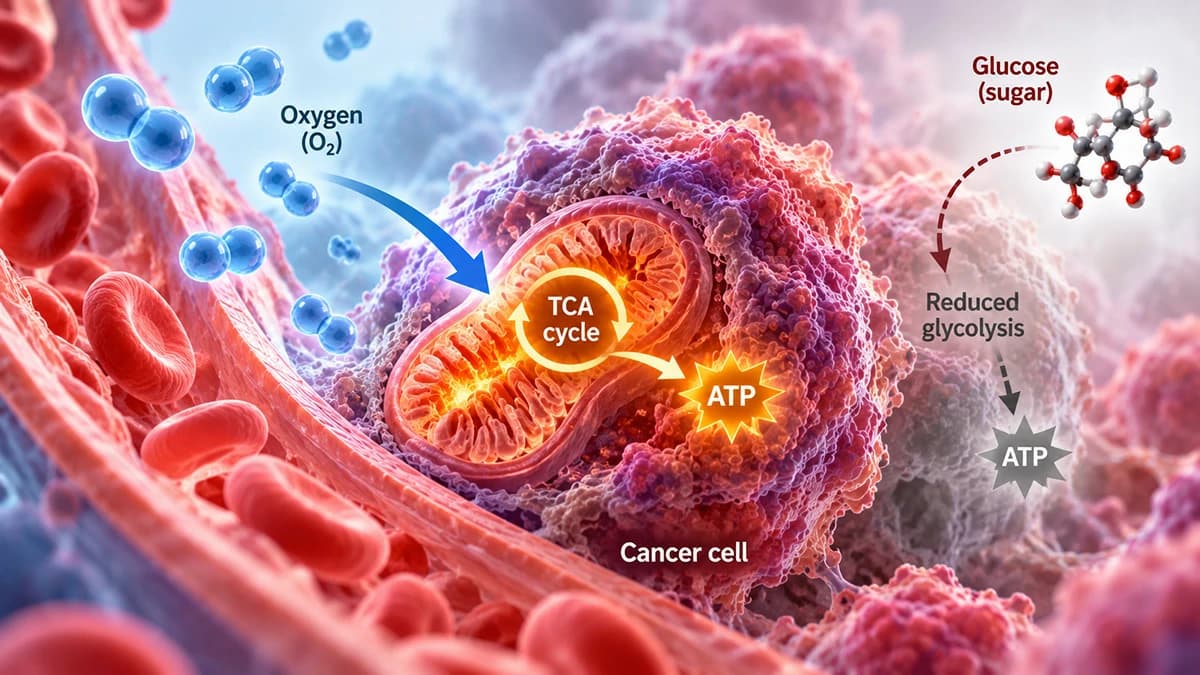
首先需要纠正一个常见误解。偏好糖酵解,并不意味着癌细胞的线粒体已经受损或毫无用处。对癌症代谢进行综述的研究发现,许多肿瘤细胞仍保有功能完整、能够进行氧化磷酸化的线粒体。氧化磷酸化是一种依赖氧气的过程,每个葡萄糖分子产生的能量远多于单独进行糖酵解时的能量。
换句话说,许多癌细胞选择糖酵解——至少在部分时间内如此——而不是因为内部机制损坏、被迫只能依赖糖酵解。这一区别很重要。如果线粒体仍能正常工作,那么当环境发生变化时,细胞就可以重新转向氧化磷酸化;研究人员在一些特定且经过充分研究的情况下,确实观察到了这一点。
具有干细胞样特征的癌细胞常依赖氧化磷酸化
对“燃烧糖供能”这一刻板印象而言,最明确的例外或许来自癌症干细胞。癌症干细胞是肿瘤内部的一小部分细胞,被认为具有重新生成肿瘤的能力,也常与治疗后的耐药性相关。在急性髓系白血病这种血液癌症中,研究人员发现了一群罕见的白血病干细胞。这些细胞处于静息状态,不进行分裂,并且高度依赖氧化磷酸化,而不是糖酵解。一组研究人员显示,通过阻断一种与这种氧化代谢依赖性相关的生存蛋白,可以选择性地杀死这些静息细胞;这一结果也揭示出,这些细胞与肿瘤主体中的大多数细胞存在多么不同的行为方式。
在胶质瘤(一种脑肿瘤)中也发现了类似模式。与肿瘤中的非干细胞相比,具有干细胞样特征的胶质瘤细胞同样表现出更偏向氧化磷酸化而非糖酵解的代谢特征。综合来看,这些发现提示,与肿瘤长期持续存在最相关的细胞,不一定是最符合 Warburg 经典描述的细胞。
逃过治疗:胰腺癌案例
耐药性为理解这种复杂性提供了另一个窗口。在胰腺癌实验室模型中,成功熬过致癌基因被关闭的癌细胞,其代谢从糖酵解转向了线粒体功能。这一转变部分依赖于两个众所周知的癌基因——KRAS 和 MYC——发出的信号;这两个基因都能重新编排细胞产生能量的方式,以及细胞的生长方式。存活下来的细胞依赖功能正常的线粒体来维持生存,而这种依赖在最初的、对药物敏感的肿瘤细胞中并不存在。
这一点对治疗很重要,因为这类细胞——也就是治疗后残留下来的细胞——往往是复发的种子。如果残留病灶依赖氧化磷酸化而不是糖酵解,那么仅围绕 Warburg 模型设计的治疗策略,可能会漏掉最有可能导致复发的细胞。
转移偏好不同的代谢策略
向远处器官扩散需要大量能量,而能够完成这一过程的细胞,似乎比依赖糖酵解更多地调用线粒体。一项针对循环肿瘤细胞的研究发现,循环肿瘤细胞是指从肿瘤脱落并进入血液的细胞;当一种促进线粒体形成的蛋白活性增强时,细胞会更多地依赖氧化磷酸化。具有这种代谢特征的细胞更有可能成功发生转移,这项工作与 Valerie LeBleu 研究团队有关。这一结果表明,癌细胞可以为了完成某项特定且要求很高的任务而调动氧化代谢,而不只是保留了正常生物学中的某种遗留特征。
一个肿瘤可以同时使用两种燃料
即使在同一个肿瘤内部,细胞的行为也并不完全相同。有些区域通常氧气供应不足,会高度依赖糖酵解,并将乳酸——糖酵解的副产物——作为废物释放出去。附近的其他细胞如果更容易获得氧气,则可以吸收这些乳酸,通过氧化磷酸化将其“燃烧”掉,而不是直接使用葡萄糖。研究人员将这种安排称为乳酸穿梭,有时也把它描述为同一肿瘤内部两个细胞群体之间的分工。
与其把肿瘤看成一台发动机,不如把它想象成一座小城:一家工厂的废物,成为另一家工厂的原材料。这种内部协作使任何针对单一、统一代谢靶点的治疗策略变得更加复杂,因为仅仅切断葡萄糖供应,可能无法影响那些依赖回收乳酸供能的细胞。
能否直接靶向氧化磷酸化?
如果某些癌细胞依赖氧化磷酸化,那么阻断这一过程就成为一个显而易见的研究问题。实验室研究显示,二甲双胍是一种长期用于治疗2型糖尿病的药物,它可以阻断线粒体能量产生机制中的关键环节,并在临床前模型中减缓肿瘤生长。这一发现推动了更广泛的兴趣,即开发专门干扰癌细胞线粒体能量产生的药物。
但目前还没有任何一种以阻断氧化磷酸化为基础的癌症治疗获批。相关研究仍主要处于临床前阶段,研究对象是细胞系和动物模型,而不是已经在患者中得到验证的治疗。这是一个有希望的研究方向,但不是今天已经可以使用的治疗方法。
比 Warburg 想象的更灵活的图景
综合这些发现来看,癌症代谢具有适应性,而不是固定不变。癌细胞可以依赖糖酵解、氧化磷酸化,或依赖通过线粒体途径处理的谷氨酰胺;具体取决于它们的遗传特征、位于肿瘤中的位置,以及所处的疾病阶段。除在上述胰腺癌例子中发挥作用外,研究还显示,MYC 可以推动细胞通过线粒体代谢燃烧谷氨酰胺;这是一条不同于经典糖酵解的代谢途径。
这种灵活性通常称为代谢可塑性,如今被认为是癌症代谢的一个定义性特征,而不只是 Warburg 效应的附带现象。这也解释了为什么“癌症是否依赖糖供能”这个问题没有单一答案。有些细胞确实依赖糖,尤其是在肿瘤缺氧区域中的细胞。另一些细胞,包括本文所述的具有干细胞样特征、耐药性和转移能力的细胞群,则依赖以氧气为基础的能量机制,而 Warburg 曾认为癌细胞基本上已经放弃了这种机制。
这对患者如何理解有关通过饮食或禁食“饿死癌症”的流行说法,有一个明确启示。限制糖的摄入并不能一致地“饿死”肿瘤,因为许多与复发和扩散最相关的细胞,并不主要依靠葡萄糖驱动的糖酵解来生存。该领域的代谢研究仍是活跃的科学研究方向,不能作为替代标准循证癌症治疗的依据。
常见问题
参考文献
- Otto Warburg (1956). On the Origin of Cancer Cells
- Ralph J. DeBerardinis, Julian J. Lum, Georgia Hatzivassiliou, Craig B. Thompson (2008). The Biology of Cancer: Metabolic Reprogramming Fuels Cell Growth and Proliferation
- Eleni D. Lagadinou, Alexander Sach, Kevin Callahan, Randall M. Rossi, Sarah J. Neering, Mohammad Minhajuddin, John M. Ashton, Shanshan Pei, Valerie Grose, Kristen M. O’Dwyer, Jane L. Liesveld, Paul S. Brookes, Michael W. Becker, Craig T. Jordan (2013). BCL-2 Inhibition Targets Oxidative Phosphorylation and Selectively Eradicates Quiescent Human Leukemia Stem Cells
- Erina Vlashi, Chann Lagadec, Laurent Vergnes, Tomoo Matsutani, Kenta Masui, Maria Poulou, Ruxandra Popescu, Lorenza Della Donna, Patrick Evers, Carmen Dekmezian, Karen Reue, Heather Christofk, Paul S. Mischel, Frank Pajonk (2011). Metabolic state of glioma stem cells and nontumorigenic cells
- Andrea Viale, Piergiorgio Pettazzoni, Costas A. Lyssiotis, Haoqiang Ying, Nora Sánchez, Matteo Marchesini, Alessandro Carugo, Tessa Green, Sahil Seth, Virginia Giuliani, Maria Kost-Alimova, Florian Muller, Simona Colla, Luigi Nezi, Giannicola Genovese, Angela K. Deem, Avnish Kapoor, Wantong Yao, Emanuela Brunetto, Ya’an Kang, Min Yuan, John M. Asara, Y. Alan Wang, Timothy P. Heffernan, Alec C. Kimmelman, Huamin Wang, Jason B. Fleming, Lewis C. Cantley, Ronald A. DePinho, Giulio F. Draetta (2014). Oncogene ablation-resistant pancreatic cancer cells depend on mitochondrial function
- Valerie S. LeBleu, Joyce T. O’Connell, Karina N. Gonzalez Herrera, Harriet Wikman, Klaus Pantel, Marcia C. Haigis, Fernanda Machado de Carvalho, Aline Damascena, Ludmilla Thome Domingos Chinen, Rafael M. Rocha, John M. Asara, Raghu Kalluri (2014). PGC-1α mediates mitochondrial biogenesis and oxidative phosphorylation in cancer cells to promote metastasis
- (2008). Targeting lactate-fueled respiration selectively kills hypoxic tumor cells in mice.
- (2014). Metformin inhibits mitochondrial complex I of cancer cells to reduce tumorigenesis.
- David R. Wise, Ralph J. DeBerardinis, Anthony Mancuso, Nabil Sayed, Xiao-Yong Zhang, Harla K. Pfeiffer, Ilana Nissim, Evgueni Daikhin, Marc Yudkoff, Steven B. McMahon, Craig B. Thompson (2008). Myc regulates a transcriptional program that stimulates mitochondrial glutaminolysis and leads to glutamine addiction
- Ralph J. DeBerardinis, Navdeep S. Chandel (2016). Fundamentals of cancer metabolism
团队审阅: 本文由以下人员审阅 Canceria Research Team